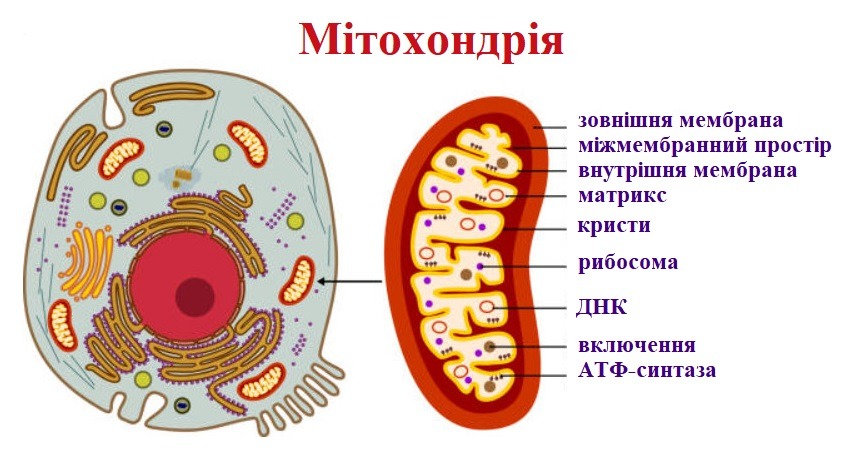
Мітохондрії часто називають «енергетичними станціями» клітини або навіть «батарейками». Така метафора зручна, але вона майже не передає справжньої складності цих органел.
Усередині наших клітин працює не проста батарейка, а надзвичайно складна система молекулярних комплексів, мембран, транспортних систем, ферментів, генетичної інформації та механізмів контролю якості.
Мітохондрія одночасно бере участь у виробництві АТФ, регуляції клітинного метаболізму, підтриманні кальцієвого та окисно-відновного балансу, синтезі деяких біомолекул, клітинній сигналізації та програмованій загибелі клітини.
Але особливо цікава інша її властивість.
Мітохондрія має власну ДНК, власні рибосоми та зберігає низку ознак, характерних для бактерій. Водночас переважна більшість білків сучасної мітохондрії кодується вже не її власним геномом, а ядерною ДНК клітини. Ці білки синтезуються в цитоплазмі, після чого спеціальні молекулярні системи доставляють їх у мітохондрію.
Саме ця незвичайна генетична та молекулярна мозаїка лежить в основі однієї з найважливіших ідей сучасної біології — ендосимбіотичного походження мітохондрій.
Але що саме означає ця теорія?
І наскільки добре ми насправді розуміємо перехід від вільноживучої бактерії до складної органели?
Це питання набагато цікавіше, ніж проста фраза «колись бактерія стала мітохондрією».
Ендосимбіотична теорія
Сучасна біологія має значний масив доказів на користь бактеріального походження мітохондрій.
Мітохондріальний геном має бактеріальні риси. Його ДНК кільцева, а низка компонентів мітохондріального апарату синтезу білка має спільні риси з бактеріальними системами.
Філогенетичні дослідження пов’язують предка мітохондрій з альфа-протеобактеріями. Загальна картина сучасної науки полягає в тому, що в далекому минулому бактеріальний партнер вступив у тривалу взаємодію з клітиною-хазяїном, а ця взаємодія зрештою привела до виникнення мітохондріальної органели.
Проте тут необхідно зробити важливе уточнення.
Ми не маємо відеозапису цієї події.
Не існує сучасного експерименту, який буквально відтворив би всю історію перетворення давнього ендосимбіонта на сучасну мітохондрію.
Тому потрібно розділяти два питання:
- Чи існують сильні докази бактеріального походження мітохондрій?
Так. - Чи відома нам у всіх деталях послідовність подій, завдяки якій цей симбіоз перетворився на сучасну мітохондрію?
Ні. Походження еукаріотичної клітини та ранні етапи інтеграції її компонентів залишаються активною галуззю досліджень.
І саме тут починається найцікавіша частина.
Мітохондрія — це не батарейка
Щоб зрозуміти масштаб проблеми, потрібно подивитися, що відбувається всередині мітохондрії.
Основна енергетична валюта клітини — АТФ, аденозинтрифосфат.
Клітина постійно синтезує АТФ і постійно його витрачає.
АТФ необхідний для скорочення м’язів, активного транспорту речовин через мембрани, синтезу білків, роботи багатьох ферментів, передачі сигналів та величезної кількості інших процесів.
Але мітохондрія не отримує АТФ із повітря.
Вона використовує енергію хімічних речовин, які походять переважно з поживних речовин.
Це багатоступенева система.
Перший етап: гліколіз
Процес починається ще до потрапляння в мітохондрію.
У цитоплазмі відбувається гліколіз — серія реакцій, під час яких одна молекула глюкози перетворюється на дві молекули пірувату.
При цьому утворюється чотири молекули АТФ, але дві витрачаються на початкових етапах.
Тому чистий результат гліколізу — дві молекули АТФ на одну молекулу глюкози.
Одночасно утворюються відновлені переносники електронів, які передають енергію далі.
Піруват після цього потрапляє до мітохондрії.
Цикл Кребса
У матриксі мітохондрії відбувається цикл трикарбонових кислот, або цикл Кребса.
Його головне значення полягає не в безпосередньому виробництві великої кількості АТФ.
Основний результат — утворення відновлених переносників електронів, передусім NADH та FADH₂.
Саме вони передають високоенергетичні електрони до наступної системи.
І тут ми підходимо до центрального механізму.
Електрон-транспортний ланцюг
На внутрішній мембрані мітохондрії розташовані великі білкові комплекси.
Їхня робота пов’язана з перенесенням електронів та переміщенням протонів через мембрану.
Електрони переходять через послідовність переносників.
Енергія цих переходів використовується для створення електрохімічного градієнта протонів.
У результаті на різних сторонах внутрішньої мембрани виникає різниця електрохімічного потенціалу.
Це можна образно порівняти з водосховищем.
Вода знаходиться на висоті, і через турбіну може повернутися вниз, виконуючи роботу.
У мітохондрії замість води маємо потік протонів, а замість звичайної турбіни — молекулярного механізму, який називають АТФ-синтазою.
АТФ-синтаза — молекулярний ротор
АТФ-синтаза — один із найважливіших біологічних двигунів, який виробляє аденозинтрифосфат – універсальне джерело енергії у клітинах.
Її роботу не просто припускали за аналогією.
Обертання молекулярного ротора F₁-АТФази було безпосередньо спостережено експериментально ще в 1990-х роках. Подальші дослідження дозволили деталізувати послідовність конформаційних станів, через які проходить фермент під час синтезу АТФ.
Механізм можна дуже спрощено описати так.
Потік протонів через мембранну частину ферменту створює обертальний рух.
Цей рух передається на центральний ротор.
Ротор змінює конформацію каталізаторних центрів F₁-частини ферменту.
У результаті ADP та неорганічний фосфат можуть бути перетворені на АТФ.
Отже, тут відбувається надзвичайно цікаве перетворення енергії: електрохімічний градієнт → механічне обертання → хімічна енергія АТФ.
Це не просто метафора. Молекулярне обертання цієї машини було експериментально продемонстровано.
Молекулярний завод
Тому слово «завод» у популярному описі мітохондрії не таке вже й перебільшене.
У системі беруть участь:
- ферменти метаболічних шляхів;
- комплекси перенесення електронів;
- транспортні білки;
- мембранні канали;
- АТФ-синтаза;
- білки складання та контролю якості;
- системи імпорту білків;
- мітохондріальний геном;
- ядерний геном;
- механізми поділу та підтримання самої органели.
Особливо показовим є дихальний комплекс I. У людини він складається з десятків субодиниць; структурні дослідження дозволили визначити його архітектуру на атомному рівні.
Отже, перед нами не один молекулярний механізм, а ціла система взаємопов’язаних молекулярних комплексів. І тут виникає фундаментальне еволюційне питання: Як така інтегрована система сформувалася?
Найцікавіша особливість: мітохондрія більше не є незалежною бактерією
Саме тут проста картинка «бактерія оселилася всередині клітини» перестає бути достатньою. Сучасна мітохондрія втратила значну частину генетичної автономії. Її власний геном дуже малий порівняно з геномом вільноживучих бактерій.
У людини мітохондріальна ДНК містить лише 37 генів. А мітохондріальний протеом містить приблизно 1000–1500 різних білків. Переважна більшість цих білків кодується ядерною ДНК, синтезується на цитозольних рибосомах, а потім доставляється до мітохондрії. Це означає, що сучасна мітохондрія — результат надзвичайно глибокої інтеграції двох генетичних систем.
Як білок знаходить мітохондрію?
Ось тут починається справжня молекулярна логістика.
Уявімо білок, який має працювати всередині мітохондрії. Ген цього білка знаходиться в ядрі. Ген експресується. Білок синтезується в цитоплазмі.
Але цього недостатньо. Він повинен потрапити саме в мітохондрію і, більше того, у правильний її компартмент. Для цього існують спеціальні сигнали та системи транспорту.
Комплекс TOM у зовнішній мембрані є одним із головних входів для багатьох ядерно-кодованих мітохондріальних білків.
Далі працюють комплекси TIM та інші системи сортування.
Деякі білки проходять у матрикс. Інші вбудовуються у внутрішню мембрану. Ще інші залишаються у міжмембранному просторі або в зовнішній мембрані.
Сучасні структурні дослідження дозволяють бачити ці комплекси безпосередньо на молекулярному рівні.
Це не спрощена схема типу «білок просто якимось чином потрапив усередину». Це регульована система адресації, транспорту, сортування, складання та контролю якості.
Але тут потрібно бути особливо обережними
На цьому місці часто роблять надто сильний висновок: «Якщо система складна, вона не могла виникнути еволюційно». Але сама складність не є доказом неможливості еволюційного походження.
Навпаки, одна з центральних задач сучасної еволюційної біології — реконструювати, як складні системи могли формуватися з більш простих попередників. І саме тут важливо відрізняти проблему, яку потрібно пояснити, від доказу того, що пояснення неможливе.
Система мітохондріального імпорту справді складна. Але з цього автоматично не випливає, що всі її компоненти повинні були з’явитися одночасно.
Перенесення генів: чи справді це лише припущення?
Ендосимбіотична теорія передбачає масштабну перебудову генетичної системи. Частина генів бактеріального предка залишилася в органелі. Інша частина була втрачена. Ще частина генетичної інформації перемістилася до ядра. Цей процес називають ендосимбіотичним перенесенням генів.
Важливо: це не просто теоретична конструкція.
У сучасних геномах виявляють численні фрагменти мітохондріального походження, інтегровані в ядерну ДНК. Перенесення органелярної ДНК до ядра також спостерігається як процес, що може відбуватися й сьогодні. Тому твердження «ми не бачимо жодного механізму перенесення» було б неправильним.
Механізми перенесення генетичного матеріалу існують. Але залишається набагато цікавіше питання: як масштабне перенесення генів та їхня подальша функціональна інтеграція відбувалися на ранніх етапах еволюції мітохондрії? Це вже справжня наукова проблема.
«Курка чи яйце»?
Тут виникає аргумент, який часто називають проблемою взаємозалежності.
Сучасна мітохондрія потребує ядерно-кодованих білків.
Ядерна клітина, своєю чергою, залежить від функціонування мітохондрії.
Виникає питання: як така взаємозалежність могла сформуватися?
Це дійсно цікаве питання.
Але формулювання «система повинна була виникнути одразу повністю» не випливає з наявних даних.
Еволюційна система може проходити через проміжні стани, в яких:
- функції частково дублюються;
- один білок виконує декілька функцій;
- гени поступово втрачаються;
- дублікати генів зберігаються певний час;
- нові транспортні сигнали виникають на основі вже наявних послідовностей;
- окремі компоненти рекрутуються з інших клітинних систем.
Дослідження еволюції мітохондріального імпорту саме тому є важливим напрямом сучасної науки. Сучасний огляд 2025 року описує численні шляхи транспорту та показує, що система є результатом тривалої еволюційної інтеграції, а не просто одного універсального механізму.
Отже, питання залишається складним, але його правильна форма звучить не як «це неможливо», а як: якими саме проміжними етапами формувалася сучасна система взаємозалежності?
А як бактерія взагалі опинилася всередині клітини?
Це ще одне фундаментальне питання.
Популярна версія часто описує його приблизно так: «Клітина проковтнула бактерію, але не перетравила її».
Проте це надмірне спрощення. Ми не знаємо точної історичної послідовності подій.
Більше того, сучасні дослідження походження еукаріотів розглядають різні сценарії взаємодії між архейним хазяїном і бактеріальним партнером. Обговорюється навіть питання, чи мала клітина-хазяїн на той момент повністю сформовану систему фагоцитозу, подібну до сучасних еукаріотів.
Тому твердження: «Бактерія повинна була проникнути через сучасну еукаріотичну мембрану, потрапити у фагосому, уникнути лізосоми і після цього стати мітохондрією»
не є встановленою історичною послідовністю.
Це лише один із можливих способів уявити подію, але не доведена реконструкція.
І саме тут відкривається справжня наукова загадка.
Подвійна мембрана
Мітохондрія оточена двома мембранами.
Це одна з найбільш очевидних ознак її складної історії.
Але й тут важливо не перетворювати інтерпретацію на безпосереднє спостереження.
Подвійна мембрана добре узгоджується з ендосимбіотичним походженням, однак сучасна органела — не просто дві старі мембрани, покладені одна всередину іншої.
За мільярди років вони зазнали величезних структурних і функціональних змін.
Внутрішня мембрана особливо спеціалізована.
Саме тут розташована значна частина систем окисного фосфорилювання.
Вона підтримує електрохімічний градієнт протонів.
Вона містить складні комплекси перенесення електронів.
Вона містить АТФ-синтазу.
Вона має численні транспортні системи.
Тому сучасну мітохондріальну мембрану правильніше розглядати не як пасивну оболонку, а як високоспеціалізовану функціональну систему.
Куди дівається кисень, яким ми дихаємо?
Це також надзвичайно цікаве питання.
Кисень потрапляє в легені, переходить у кров, доставляється до тканин, дифундує в клітини й зрештою використовується мітохондріями.
У дихальному ланцюзі молекулярний кисень є кінцевим акцептором електронів.
Він приймає електрони та протони, у результаті чого утворюється вода.
У спрощеному вигляді: O₂ + 4e⁻ + 4H⁺ → 2H₂O
Тобто значна частина кисню, яку ми вдихаємо, зрештою бере участь у хімічних реакціях окисного фосфорилювання.
Саме тому безперервне постачання кисню є критично важливим для тканин, які значною мірою залежать від аеробного метаболізму.
Чи справді ми виробляємо десятки кілограмів АТФ?
У популярній літературі часто зустрічається оцінка, що людина протягом доби синтезує і використовує десятки кілограмів АТФ, іноді наводять величину близько 50–70 кг. Це не означає, що людина щодня створює з їжі 70 кг нової речовини.
Одна й та сама система молекул постійно перезаряджається. АТФ перетворюється на ADP, а ADP знову використовується для синтезу АТФ. Тому величезний добовий оборот АТФ — це передусім масштаб метаболічного потоку, а не накопичення десятків кілограмів АТФ в організмі.
Наскільки складна ця система насправді?
Надзвичайно. Але є ще одна важлива особливість. Мітохондрія не є ізольованою машиною. Вона є частиною величезної клітинної мережі.
Її функціонування залежить від:
- ядерної ДНК;
- мітохондріальної ДНК;
- рибосом;
- шаперонів;
- транспортних систем;
- ферментів;
- мембран;
- ліпідів;
- систем контролю якості;
- метаболічних шляхів;
- сигналів від самої клітини.
І водночас мітохондрія впливає на роботу клітини.
Тобто це не проста схема: клітина → мітохондрія → АТФ.
Це двостороння мережа взаємодій.
Сучасні дослідження показують, що системи імпорту білків пов’язані з іншими молекулярними комплексами, мембранними контактами, контролем якості та клітинною відповіддю на стрес.
Де закінчується встановлений факт і починається гіпотеза?
Саме тут, на мою думку, і знаходиться найцікавіше питання.
Ми можемо досить впевнено говорити про багато речей.
Ми знаємо, що:
- мітохондрії мають бактеріальні риси;
- їхній геном має бактеріальноподібні характеристики;
- філогенетичні дані пов’язують їх із бактеріальним предком;
- значна частина мітохондріальних генів у ході еволюції опинилася в ядрі;
- сучасна мітохондрія залежить від величезної кількості ядерно-кодованих білків;
- існують складні системи імпорту цих білків;
- окисне фосфорилювання працює завдяки скоординованій діяльності багатьох молекулярних комплексів.
Але ми не знаємо всіх деталей.
Не маємо повної історичної реконструкції: бактеріальний партнер → первинний симбіоз → генетична інтеграція → формування системи імпорту → редукція геному → сучасна мітохондрія.
І це важлива наукова невизначеність.
Чи є це доказом задуму?
Тут ми виходимо за межі суто біологічного питання.
З факту складності мітохондрії можна поставити філософське питання: чи потребує така складність пояснення через задум?
Це вже не те саме питання, що: «Яким був механізм походження мітохондрії?»
Науковий метод працює з моделями, які можна порівнювати зі спостереженнями та експериментами.
Гіпотеза про ендосимбіотичне походження мітохондрій породжує конкретні передбачення, які можна перевіряти за допомогою геноміки, біохімії, клітинної біології, структурної біології та порівняльної філогенетики.
Гіпотеза про розумний задум належить до іншого рівня пояснення. Її прихильники можуть розглядати складність і функціональну організацію живих систем як аргумент на користь цілеспрямованого походження.
Але з самої складності не можна автоматично вивести конкретного розробника.
Так само наявність еволюційного механізму не означає, що всі історичні деталі вже реконструйовані.
Ці питання потрібно розділяти.
Справжня загадка
Тому, можливо, найцікавіше питання звучить не: «Чи стала мітохондрія бактерією?»
На це сучасна біологія має дуже сильну відповідь.
Цікавіше запитати: як саме сталася інтеграція?
Як змінювалися геноми двох партнерів?
Які функції були необхідними на ранніх етапах?
Які гени переносилися першими?
Чому частина генів залишилася в мітохондріальному геномі?
Як формувалися системи імпорту?
Як виникла сучасна взаємозалежність ядерного та мітохондріального геномів?
Як змінювалися мембрани?
Як формувалися складні комплекси окисного фосфорилювання?
Які проміжні форми існували між раннім ендосимбіонтом і сучасною органелою?
На ці питання наука вже має багато відповідей. Але не на всі.
І саме тому походження мітохондрій залишається однією з найцікавіших проблем еволюційної біології.
Отже, мітохондрія — це набагато більше, ніж «енергетична станція». Це складна молекулярна система, у якій протягом мільярдів років інтегрувалася генетична інформація, що походить від двох різних еволюційних ліній.
АТФ-синтаза демонструє перетворення електрохімічного градієнта на механічне обертання і далі — на хімічну енергію АТФ. Дихальні комплекси переносять електрони та створюють протонний градієнт. Внутрішня мембрана підтримує умови, необхідні для окисного фосфорилювання. Мітохондріальний геном зберігає бактеріальні риси. А більшість білків, необхідних для роботи органели, кодується ядерним геномом і доставляється до мітохондрії спеціальними молекулярними системами.
Це справді чудова система. Але науково чесна позиція полягає не в тому, щоб називати невідомі етапи «неможливими», і не в тому, щоб вважати реконструкцію цих етапів повністю завершеною.
Правильніше сказати: ми маємо дуже сильні докази ендосимбіотичного походження мітохондрій, але все ще досліджуємо точний механізм та послідовність подій, завдяки яким давній симбіоз перетворився на одну з найскладніших молекулярних систем сучасної клітини. І, можливо, саме це робить історію мітохондрії ще цікавішою.
Ми бачимо результат мільярдів років біологічної історії. Але що саме відбувалося на перших етапах цієї історії — і яким був повний ланцюг переходів від симбіотичних партнерів до сучасної мітохондрії — залишається предметом активного наукового пошуку. І це вже достатня причина продовжувати ставити запитання.
Джерела та рекомендована література
- Endo, T. & Wiedemann, N. Molecular machineries and pathways of mitochondrial protein transport. Nature Reviews Molecular Cell Biology(2025).
- Schmidt, O., Pfanner, N. & Meisinger, C. Mitochondrial protein import: from proteomics to functional mechanisms. Nature Reviews Molecular Cell Biology11, 655–667 (2010).
- The emerging view on the origin and early evolution of eukaryotic cells. Nature(2024).
- Endosymbiotic origin and differential loss of eukaryotic genes. Nature.
- Timmis, J. N. et al. Endosymbiotic gene transfer: organelle genomes forge eukaryotic chromosomes. Nature Reviews Genetics.
- Sim, S. I. et al. Structural basis of mitochondrial protein import by the TIM23 complex. Nature621, 620–626 (2023).
- Noji, H. et al. Direct observation of the rotation of F1-ATPase. Nature386, 299–302 (1997).
- Itoh, H. et al. Mechanically driven ATP synthesis by F1-ATPase. Nature427, 465–468 (2004).
- Keeling, P. J. Horizontal gene transfer in eukaryotes: aligning theory with data. Nature Reviews Genetics25, 416–430 (2024).
- Murphy, M. P. & O’Neill, L. A. J.A break in mitochondrial endosymbiosis as a basis for inflammatory diseases. Nature 626, 271–279 (2024).